


Отряд Акариформные клещи (Acariformes)
Переходя к рассмотрению клещей, или, точнее, клещеобразных арахнид, напомним, что они представляют собой три неродственных отряда, в такой же мере самостоятельных и обособленных, как и другие отряды арахнид. Два из них, акариформные клещи и паразитиформные клещи, включают огромное число чрезвычайно разнообразных форм. Третий отряд - клещи-сенокосцы, напротив, мал и однотипен.
Как мы говорили, замечательная особенность больших отрядов клещей состоит в том, что их громадное и на первый взгляд хаотичное разнообразие в действительности представляет естественные ряды форм от примитивных исходных до сильно изменившихся в разных направлениях. Поэтому сравнительное изучение современного разнообразия каждого отряда позволяет представить пути и результаты его длительной эволюции и таким образом понять строение, индивидуальное развитие и образ жизни его многочисленных и подчас совсем непохожих друг на друга представителей. Кратко и популярно изложить данные о клещах в такой сравнительной форме нелегко, но другого пути для понимания природы клещей нет. При рассмотрении каждого отряда мы сначала остановимся на наиболее примитивных его представителях, служащих прототипами отрядов, а далее попробуем проследить, как изменялись образ жизни, строение и развитие в пределах отрядов. Конечно, мы сможем коснуться лишь некоторых основных группировок клещей в такой мере, в какой это необходимо для общей картины.
Акариформные клещи - это самый большой отряд клещеобразных, насчитывающий более 6000 видов, причем эта цифра далека от действительной. Благодаря интенсивному изучению клещей, особенно в последнее время, ежегодно появляются описания сотен новых видов. Разнообразие акариформных клещей очень велико. Отряд делится на два подотряда: саркоптиформные клещи (Sarcoptiformes) и тромбидиформные клещи (Trombidiformes). К первому относятся такие обширные и разнообразные группы, как панцирные, тироглифоидные клещи и ряд паразитических - перьевые, волосяные, чесоточные и др. Второй подотряд включает очень много группировок, в том числе паутинных, водяных клещей, краснотелок и ряд других. В этом отряде немало практически важных клещей - вредителей растений и сельскохозяйственных продуктов, паразитов животных и человека. Но переносчиков инфекционных болезней здесь сравнительно немного.
Классификация отряда сложна и находится в стадии разработки. В обоих подотрядах сейчас насчитывается более 170 семейств, а общее число родов трудно указать, настолько оно различно у разных авторов. Современная классификация, несомненно, есть результат чрезмерного дробления систематических группировок, в чем отражается аналитический этап изучения клещей, на котором находится наука о них - акарология. Одно из основных систематических подразделений- семейство обычно понимается акарологами в очень суженном смысле. Есть немало "семейств" акариформных клещей всего с одним-двумя десятками видов, а семейства по нескольку сотен видов составляют скорее исключение. Если в этом отношении сравнить клещей с насекомыми, то семействам последних более соответствуют надсемейства клещей, которыми мы и будем в основном оперировать в дальнейшем.
Наиболее примитивные акариформные клещи - это низшие представители подотряда Trombidiformes - небольшое надсемейство Endeostigmata (рис. 54, табл. 8, 1). К ним близки самые примитивные представители подотряда Sarcoptiformes - клещи-палеакариды надсемейства Palaeacaroidea (рис. 57, 1). Эти два надсемейства служат прототипом отряда в целом, а их близость указывает на единство его происхождения. Эти малоизвестные формы изучались французским акарологом Гранжаном, а у нас - А. А. Захваткиным и автором этого раздела. В последние годы удалось изучить биологию и эмбриональное развитие этих клещей.
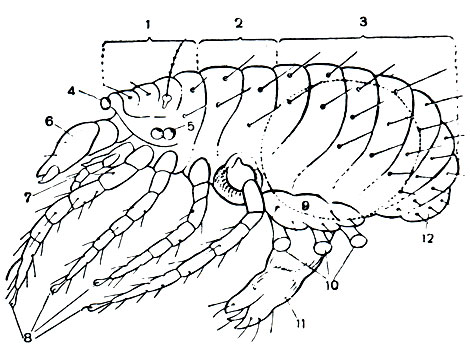
Рис. 54. Строение примитивного акариформного клеща надсемейства Endeostigmata (вид сбоку): 1 - протеросома (1-4-й сегменты); 2 - сегменты ног третьей и четвертой пар; 3 - брюшко (7-13-й сегменты); 4 - медиальный глаз; 5 - боковые глаза; 6 - хелицеры; 7 - педипальпы; 8 - ноги; 9 - половые крышки; 10 - коксальные органы; 11 - половой конус; 12 - анальные клапаны
Это очень древние клещи, найденные в ископаемом состоянии в среднедевонских отложениях и дожившие до нашего времени почти без изменений. Они живут в почвенном гумусе, и, вероятно, в этом одно из условий их эволюционного консерватизма. Почва - среда сравнительно мало менявшаяся на протяжении геологических эпох, и эти "живые ископаемые" нашли в ней такие условия, в которых смогли сохраниться.
По плану строения примитивные Acariformes соответствуют арахнидам вообще, чем опровергается ходячее мнение о том, что все клещи крайне видоизменились и деградировали. Более того, они сохранили ряд таких примитивных черт, которые давно утрачены другими арахнидами. Эти клещи очень малы, обычно всего 0,2-0,3 мм. Покровы тонкие, лишены щитков. Туловище хорошо расчленено (рис. 54), причем сегментировано не только брюшко, но и головогрудь. Сегменты хелицер, педипальп и двух передних пар ног разделены спинными бороздами и, как у кенений и сольпуг, образуют передний отдел, отвечающий голове трилобитов и называемый у клещей протеросомой. По сторонам этого отдела имеются боковые глаза, а спереди парный по происхождению медиальный глаз. Сегменты двух задних пар ног расчленены. Членистое брюшко состоит из шести сегментов и соединяется с головогрудью хорошо развитым предполовым сегментом. У других акариформных клещей сегментация обычно исчезает. Сохраняется борозда между протеросомой и задним отделом туловища, который образуется путем присоединения сегментов двух задних пар ног к брюшку и называется гистеросомой. Такой тип расчленения тела очень характерен для всего отряда.
Важную роль приобретают волоски, щетинки и другие кожные органы. Благодаря малым размерам клещей эти органы у них бывают относительно очень велики и обычно строго постоянны по числу и положению на сегментах туловища и придатках. Часть из них выполняет функции органов чувств - осязательных, воспринимающих колебания (трихоботрии на переднем отделе тела), обонятельных. Последние представлены лировидными органами и так называемыми соленидиями на ногах. Это тонкостенные замкнутые на конце трубочки со спиральной бороздой, пронизанной мельчайшими канальцами; внутрь соленидия входит отросток чувствительной нервной клетки. Щетинки нередко служат дополнительной защитой, особенно у тонкокожих форм, и бывают очень разнообразны по величине и форме - шиловидные, перистые, плоские, покрывающие клеща, как черепица, и т. п.
Хелицеры и педипальпы у низших Асаriformes свободные, не соединяются в "головку", что считалось характерным для всех клещей. Хелицеры обычно 3-члениковые, с клешней, но есть формы, у которых можно различить до шести члеников хелицер, чем последние очень похожи на ноги. Тазики педипальп подвижные и имеют жевательные лопасти. Ноги с одним когтевидным эмподием, еще лишены добавочных коготков, которые в дальнейшем образуются из щетинок.
Строение ротовых органов в деталях довольно разнообразно уже у низших форм. Как удалось выяснить, это связано с разнообразием питания. Одни из них жующие растительноядные, потребляют гифы и споры грибов, почвенные водоросли, дрожжи и т. п. Другие ловят ногохвосток, других клещей, прокалывают их хелицерами и высасывают. Третьи высасывают яйца ногохвосток и т. д.
Замечательно строение наружного полового аппарата - сложного образования, занимающего большую часть нижней поверхности брюшка и сходно устроенного у обоих полов. Как теперь выясняется, в его состав входят конечности трех передних сегментов брюшка. Половое отверстие открывается на конце крупного выпячивающегося полового конуса на восьмом сегменте. Ножки восьмого, девятого и десятого сегментов срастаются и образуют половые крышки, прикрывающие половой конус. Коксальные органы брюшных ножек, имеющие вид выпячивающихся мешочков, наполняемых гемолимфой, в числе трех пар расположены под крышками. Они называются у клещей половыми присосками. Это органы чувств, играющие определенную роль при сперматофорном оплодотворении и откладке яиц, по-видимому, воспринимающие влажность. Благодаря микроскопическим размерам низших клещей их сперматофоры и особенно яйца, будучи малы абсолютно, очень велики относительно взрослой особи, с чем и связана громоздкость и сложность наружного полового аппарата. Яйца созревают и откладываются по одному, так как в теле самки может уместиться обычно только одно готовое к откладке яйцо.
Примитивные Acariformes лишены специальных органов дыхания и дышат кожей. В сочетании с тем, что только что говорилось о судьбе брюшных ножек, это приводит нас к выводу, что предки этого отряда клещей никогда не имели легких: из воды они прямо перешли к жизни во влажной почве и кожному дыханию, в чем сходны с кенениями. В дальнейшем у акариформных клещей образовались трахеи, причем в разных группах независимо, в разных местах. Примитивные черты обнаруживаются во внутреннем строении низших форм, например, имеется три пары выделительных коксальных желез, функционирующих у взрослых клещей, сохраняется сегментация кишечника и т. п.
Индивидуальное развитие низших Acariformes представляет большой интерес. Оплодотворение сперматофорное. Самец оставляет на субстрате клейкие сперматофоры на ножке, а самка захватывает их наружными половыми органами. Но у некоторых видов даже нет еще сперматофора, а просто выделяются капли семенной жидкости, которые самка, идя за самцом, всасывает половым конусом. Яйца очень малы (0,1-0,2 мм) и бедны желтком. Благодаря этому индивидуальное развитие сохранило архаичные черты, утраченные другими арахнидами. Дробление яйца полное, равномерное, по некоторым признакам напоминает дробление яйца кольчатых червей. Зародыш проходит четырехсегментную стадию (рис. 55, А), сходную с личинкой трилобитов - протасписом (рис. 6).
Клещи этого отряда выходят из яйца на значительно более ранней стадии развития, чем все остальные арахниды. Образование кутикулы и подготовка к вылуплению начинается в то время, когда у зародыша еще не развита четвертая пара ног, нет зачатков брюшных ножек и недостает трех концевых сегментов брюшка. Поэтому вылупляется шестиногая личинка с коротким брюшком, лишенным трех последних сегментов и половых створок. Первая кутикула, одевающая зародыш, снабжена шипиками или упругими щетинками ("яйцевыми зубами"), которые служат для разрыва яйцевых оболочек. Это так называемая предличинка. У большинства акариформных клещей под этой первой кутикулой в яйце вскоре образуется кутикула собственно личинки, которая, вылупляясь, сбрасывает яйцевые оболочки и предличиночный покров. Но у низших представителей отряда предличинка вылупляется сама, хотя обычно бывает неподвижна. Недавно автору этого раздела удалось найти вид низших клещей, у которых предличинка подвижна и хорошо бегает, так что по существу сохранилось два активных личиночных возраста, разделенных линькой.
Личинка (рис. 55, В) превращается в нимфу, которая, трижды линяя, становится взрослым клещом. Соответственно различают три нимфальных возраста: протонимфу, дейтонимфу и тритонимфу. В течение нимфального периода появляются сегменты брюшка и конечности, недостававшие у личинки (рис. 55, Г-Е). Замечательно, что новые сегменты образуются один за другим вперед от анальной зоны роста и одновременно на лежащих впереди сегментах появляются конечности. Иначе говоря, здесь частично сохранился анаморфоз, т. е. тот первичный способ развития, который мы видели у предков хелицеровых - трилобитов. При превращении личинки в протонимфу появляются ноги четвертой пары, еще не вполне развитые и почти лишенные щетинок; на конце брюшка, перед створками, прикрывающими анальное отверстие, образуется новый, одиннадцатый по общему счету сегмент; на восьмом сегменте появляются видоизмененные ножки - зачатки половых клапанов с парой коксальных органов под ними. У дейто- и тритонимфы последовательно появляются двенадцатый и тринадцатый сегменты брюшка, а на девятом и десятом сегментах - видоизмененные ножки. Последние одни за другими прирастают сзади к ранее появившимся, образуя половые крышки с тремя парами коксальных органов под ними. При последней линьке и превращении тритонимфы во взрослого клеща новых сегментов и конечностей уже не появляется, а образуется только половой конус.
Жизненная форма низших Acariformes очень своеобразна и не меняется от личинки до взрослого клеща. Всю жизнь эти клещи обитают во влажной почве, в перегнивших растительных остатках, в пространствах между частичками, и не выработали каких-либо специальных расселительных фаз, свойственных другим клещам. Они чрезвычайно влаголюбивы и могут жить только в воздухе, насыщенном водяными парами. Извлеченные из почвы, они быстро высыхают и гибнут. Но не менее опасна и капельная влага. Если клещ прилипнет к поверхностной пленке, он намокает и гибнет. Условия жизни этих крошечных дышащих кожей существ лежат на грани воды и пара. С одной стороны, угроза высохнуть, с другой - безнадежно прилипнуть к воде и размокнуть. Эти клещи так малы, что силы поверхностного натяжения воды для них резко преобладают над земным тяготением. Их стихия - силы молекулярного сцепления. Отсюда понятны и некоторые приспособления - несмачивающиеся покровы и прыгательные задние ноги у целого ряда форм. Последнее требует пояснений. Наблюдая этих клещей под микроскопом на поверхности воды, можно видеть, как они беспомощно перебирают ногами, скользя и не двигаясь с места. А прорвать коготками поверхностную пленку опасно: мениски намертво схватят за ноги, и тогда конец. Но вот удар задними ногами - и клещ легко отрывается, перескакивая на новое место.
Заметим, что, вероятно, в том же состоит истинный смысл прыгательного аппарата низших бескрылых насекомых - отряда ногохвосток (Collembola), которые обитают совместно с низшими клещами и представляют ту же жизненную форму мелкого тонкокожего несмачиваемого прыгающего жителя влажных пористых субстратов.
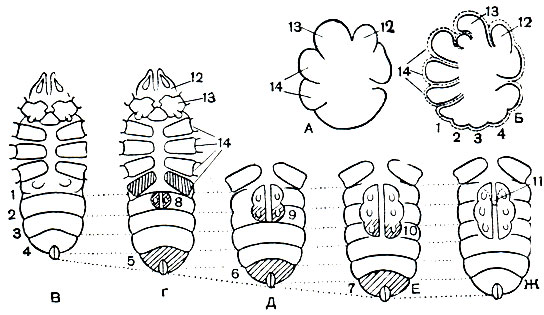
Рис. 55. Индивидуальное развитие акариформных клещей (исходный тип): А - зародыш на четырехсегментной стадии, вид сбоку; Б - шестиногий зародыш с неполным числом брюшных сегментов в момент выделения первой кутикулы (предличинка); В - личинка; Г-Е - прото-, дейто- и тритонимфа; Ж - взрослая фаза; 1-7- сегменты брюшка; 8-10 - половые крышки с коксальными органами под ними; 11 - половой конус; 12 - хелицеры; 13 - педипальпы; 14 - ноги (четвертая пара намечается уже у личинки). Послезародышевые фазы изображены с брюшной стороны, концевые отделы ног не показаны, сегменты и придатки, вновь образующиеся на каждой фазе, заштрихованы
Интересно, что некоторые виды тех и других выходят из почвы на поверхность стоячих водоемов. Низшие акариформные клещи и ногохвостки живут бок о бок с незапамятных времен, они найдены вместе в девонских отложениях, которым 300 миллионов лет, и, вероятно, были одними из первых членистоногих, заселивших почву на нашей планете.
Таково исходное состояние отряда Acariformes. Выше мы говорили о роли малых размеров в эволюции клещей. В судьбе данного отряда роль малых размеров особенно отчетлива и двояка. С одной стороны, благодаря малым размерам эти древнейшие клещи остановились на более низком эволюционном уровне, чем другие арахниды. Обогащение яиц желтком, столь характерное для хелицеровых вообще, здесь затормозилось малой величиной самки. В результате сохранился архаичный способ развития (шестиногая личинка, анаморфоз) и примитивные черты строения (полнота сегментации и др.), о чем свидетельствуют низшие представители отряда.
Но, с другой стороны, акариформные клещи в течение огромного периода времени их жизни на суше максимально использовали приспособительные возможности, которые открылись перед ними благодаря малым размерам. Они в изобилии заселили почву и всевозможные пористые органические субстраты, из почвы устремились на растения и животных в качестве паразитов, проникли даже в водоемы. При этом замечательно, что архаичный метаморфоз, о котором мы только что говорили, явился той основой, на которой возникли приспособления к новым условиям. По мере необходимости отдельные фазы метаморфоза брали на себя те или иные жизненные функции: одни стали питательными, другие расселительными или переживающими неблагоприятную обстановку; даже размножение, в зависимости от условий жизни, оказалось возможным и целесообразным на разных фазах индивидуального развития. Благодаря малым размерам взрослого клеща и отсутствию необходимости длительного роста возникли чрезвычайно быстро размножающиеся формы - тот скоростной тип развития, о котором мы упоминали.
Таким образом, огромное разнообразие акариформных клещей возникло на основе различных приспособительных изменений их жизненного цикла, причем эти приспособления складывались на более низком эволюционном уровне, чем тот, на котором находятся другие арахниды.
На столбовой дороге эволюции, по которой прошли хелицеровые животные, акариформные клещи раньше других остановились и рассыпались по боковым тропкам. Поскольку в основе эволюции клещей лежат приспособительные изменения индивидуального развития, мы составили сравнительную схему жизненных циклов для данного отряда в целом, к которой нам постоянно придется обращаться по ходу дальнейшего изложения материала (рис. 56). Следует сразу же отметить, что при сравнительном рассмотрении жизненных циклов клещей, помимо специализации отдельных фаз развития, усложнения метаморфоза, а также живорождения, мы столкнемся с такими несколько непривычными явлениями, как уподобление взрослой фазы молодым (педоморфоз), сдвиг половой зрелости на ранние фазы цикла и отпадение поздних (неотения), выпадение промежуточных фаз, сверхраннее вылупление из яйца (дезэмбрионизация) и размножение в полуэмбриональном состоянии и т. п.
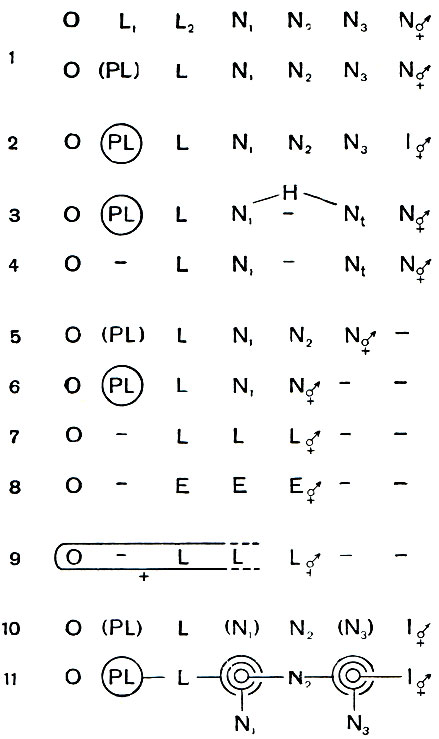
Рис. 56. Эволюция индивидуального развития клещей отряда Acariformes: 1 - исходные циклы (Endeostigmata, Palaeacaroidea); 2 - панцирные клещи (имагинизация взрослой фазы); 3 - тироглифоидные клещи (преобразование дейтонимфы в гипопуса); 4 - паразитические акаридии; 5 - почвенные простигматические клещи; 6 - тетраниховые клещи; 7 - шестиногие клещи; 8 - галлообразующие клещи; 5-8 - ряд нарастания неотении - размножения во все более раннем возрасте; 9 - тарсонемиды (утробное развитие, живорождение); 10 - краснотелки (повторный гистолитический метаморфоз); 11 - водяные клещи гидракарины (двойные линьки); О - яйцо; L - личинка; PL, взятое в скобки,- желточное питание предличинки; PI, в кругу - пред-личинка в яйце; N1-N3 - прото-, дейто- и тритонимфа; N1, N3, взятые в скобки,- покоящиеся нимфы; Н - гипопус; Е - пол у эмбриональное состояние; I - имаго; - - выпадение фаз; значком 'самка, самец' обозначены размножающиеся фазы
Подотряд Саркоптиформные клещи (Sarcoptiformes)
Представителей этого подотряда можно назвать грызущими или жующими акариформными клещами, так как большинство их обладает клешневидными хелицерами с крепкими клешнями жующего типа. Питаются они главным образом твердой растительной пищей, а переходя к паразитизму на позвоночных животных, питаются кожей, пером, волосом, выделениями кожных желез. В этот подотряд входят две большие серии семейств - панцирные клещи, или орибатиды (Oribatei), и акаридии (Acaridiae). В пределах каждой серии семейства объединяются в ряд надсемейств. Серии отражают два главных направления эволюции жизненного цикла в этом подотряде. У орибатид взрослая фаза развития становится панцирной и, помимо размножения, выполняет функцию расселения и переживания неблагоприятных условий. У свободноживущих акаридии такой расселительной и переживающей фазой становится дейтонимфа - так называемый гипопус, свойственный относящимся сюда тироглифоидным клещам (надсем. Tyroglyphoidea). При переходе акаридии к паразитизму переживающая дейтонимфа обычно выпадает. Таковы перьевые клещи (надсем. Analgesoidea), чесоточные клещи (надсем. Sarcoptoidea) и ряд других.
Панцирные клещи (Oribatei) - это самая обширная группа среди почвенных клещей, включающая, по разным авторам, от 40 до 95 семейств. Главная особенность орибатид, благодаря которой они распространились повсюду и достигли громадного видового разнообразия, состоит в том, что у взрослой фазы образовались твердый панцирь и трахеи, взрослый клещ стал устойчивым к внешним воздействиям, долговечным и способным активно переселяться. Предшествующая часть жизненного цикла сохранилась при этом почти без изменений (рис. 56,2). Личинка и нимфы лишены панциря и трахей и вынуждены жить во влажном воздухе в толще субстрата.
Заключенное в панцирь тело взрослого клеща разделено на протеро- и гистеросому, обычно сращенные неподвижно. Но в группе Ptyctima протеросома может подгибаться, под нее прячутся ноги и панцирь замыкается в виде гладкого шарика (рис. 57, 9, табл. 8, 10). Ротовые органы - короткие хелицеры с грызущими клешнями и небольшие педипальпы - спрятаны в углублении, образованном краями щита, и могут прикрываться снизу сросшимися в пластинку тазиками педипальп. Ноги крепкие, их членики иногда четковидные, на лапках 1-3 коготка. Тазики ног срастаются с панцирем. Снизу на гистеросоме два отверстия, герметически закрывающиеся парными створками. Заднее - анальное, из переднего выпячивается наружный половой аппарат. Половой конус самки обычно превращен в крупный яйцеклад, у самца половой конус служит для выведения сперматофоров. У основания конуса под створками имеются три пары пальчатых коксальных органов. Хорошо развиты покровные органы чувств (щетинки, соленидии на ногах и др.); глаз нет. Характерна пара видоизмененных, нередко булавовидных щетинок - трихоботрий на протеросоме. С их помощью воспринимаются колебания, причем орибатиды чутко реагируют на прикосновение и сотрясение субстрата, отвечая замиранием (танатозом). Дышат взрослые клещи трахеями, которые имеют вид тонких неветвящихся трубочек и открываются четырьмя парами стигм в местах причленения ног.
Взрослую фазу панцирных клещей обычно называют имаго - термином, который требует пояснений. Этот термин, в переводе означающий "истинный облик", возник в энтомологии для обозначения взрослого крылатого насекомого и подчеркивает его отличия от нелетающих предимагинальных фаз, особенно в случае превращения червеобразной личинки в крылатую форму. Но в дальнейшем понятие "имаго" стало попросту синонимом размножающегося насекомого и, проникнув в таком виде в акарологию, лишилось всякого смысла. Однако это понятие слишком укоренилось, чтобы можно было отказаться от него, как это пытаются делать некоторые акарологи. Полезнее его уточнить, и тогда оно приобретет важное значение не только для клещей, но и для членистоногих вообще. Способность размножаться не есть еще основание называть взрослую фазу имагинальной. Об имаго мы будем говорить в том случае, когда взрослая фаза наряду с размножением берет на себя функцию расселения и переживания, выходит из тех более постоянных условий, в которых развиваются предимагинальные фазы, становится способной переносить превратности открытой жизни, прежде всего сухость, вырабатывает в связи с этим специальные приспособления (панцирь, трахеи и др.) и становится отличной от предшествующих фаз развития. Превращение взрослой фазы в имаго (имагинизация) есть эволюционный процесс, связанный у членистоногих с освоением суши. На этом пути возникла крылатая форма насекомых. Панцирная имагинальная фаза формируется в ряде групп клещей. Заметим, что у клещей при переходе к паразитизму на животных и растениях, особенно к скрытой жизни в полостях и тканях, мы встречаем и обратный процесс - утрату имагинальных свойств взрослой фазы (дезимагинизацию), вплоть до ее исчезновения и размножения на более ранних фазах развития.
Формирование панцирного имаго хорошо прослеживается у орибатид (рис. 57). У более примитивных форм (сем. Нуроchthoniidae и др.), близких к упоминавшимся выше клещам-палеакаридам, панцирь еще не так прочен, желтоватый или розоватый и состоит из отдельных щитков, сохраняя следы сегментации. У большинства орибатид щиты сплошные, темно-бурые или почти черные, твердые, блестящие. В ряде случаев панцирь укрепляется и усложняется дополнительными образованиями. Он бывает чрезвычайно прочен и покрыт скульптурным орнаментом (сем. Carabodidae и др.). На протеросоме обычно имеются килевидные возвышения, а над основаниями ног - твердые выступы. Нередко по бокам тела образуются крыловидные выросты (птероморфы). Обычно они неподвижны, но у так называемых крылатых клещей (сем. Galumnidae) причленены подвижно и приводятся в движение мышцами (рис. 57, 7). На ходу клещ машет ими, как крыльями, а при замирании прикрывает поджатые ноги. Эти образования даже сравниваются с боковыми (паранотальными) выростами груди древних насекомых,от которых, как считают, произошли крылья.
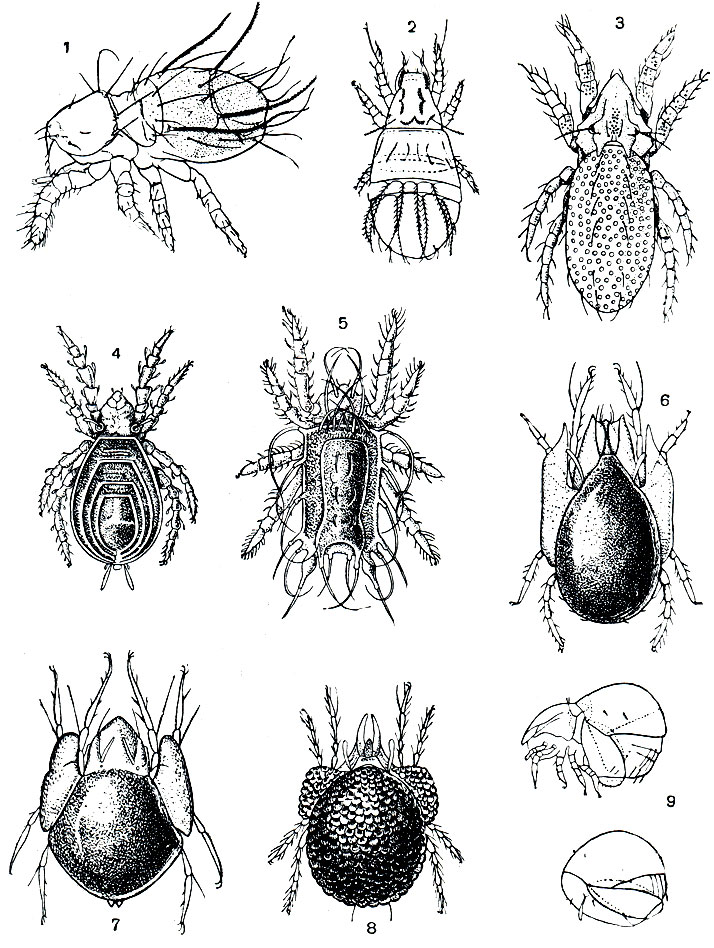
Рис. 57. Панцирные клещи: 1 - Beklemishevia galeodula - представитель примитивного надсемейства палеакарид; 2 - Cosniochthonius plumatus; 3 - Eulohmannia ribagai; 4 - Camisia spinifer; 5 - Platyliodes daderleinii; 6 - Notaspis nicoletii; 7 - Galumna mucronata; 8 - Phaenopelops variotosus; 9 - Aedoplophora glomerata; внизу - клещ с поджатой протеросомой
По мере развития имагинальных признаков взрослая фаза орибатид становится все более стойкой и долговечной. При высыхании субстрата взрослые орибатиды гораздо дольше остаются живыми, чем большинство других клещей, а продолжительность жизни имаго в благоприятных условиях достигает 15-18 месяцев и более. Различны характер размещения орибатид в толще субстрата и их расселительные способности. У видов со слаборазвитым панцирем взрослая фаза держится в толще влажного субстрата подобно личинкам и нимфам. У большинства орибатид взрослые формы преобладают в верхних слоях почвы и в растительных остатках, а при повышении влажности воздуха, в дождливое время, при туманах и росах, выходят на поверхность и поднимаются по растительности. Есть среди орибатид формы, хорошо приспособленные к активному расселению, например длинноногие клещи семейства Damaeidae, по жизненному облику удивительно похожие на мелких панцирных сенокосцев, в частности рода Nemastoma. Это такие, же закованные в панцирь, дышащие трахеями шагающие существа способные, долгое время проводить вне толщи влажных субстратов. Заметим, что все, что говорилось о биологическом значении имаго орибатид, вполне приложимо к панцирным сенокосцам, хотя в отношении последних это понятие до сих пор как-то не употреблялось.
Орибатиды встречаются во всех ландшафтно-климатических зонах, но наиболее обильны и разнообразны они в лесных почвах и гниющей подстилке, особенно во влажных районах. Их численность в таких местах бывает огромна - десятки тысяч экземпляров в одном кубическом дециметре субстрата. Орибатиды теснейшим образом связаны с микрофлорой. По типу питания эт